
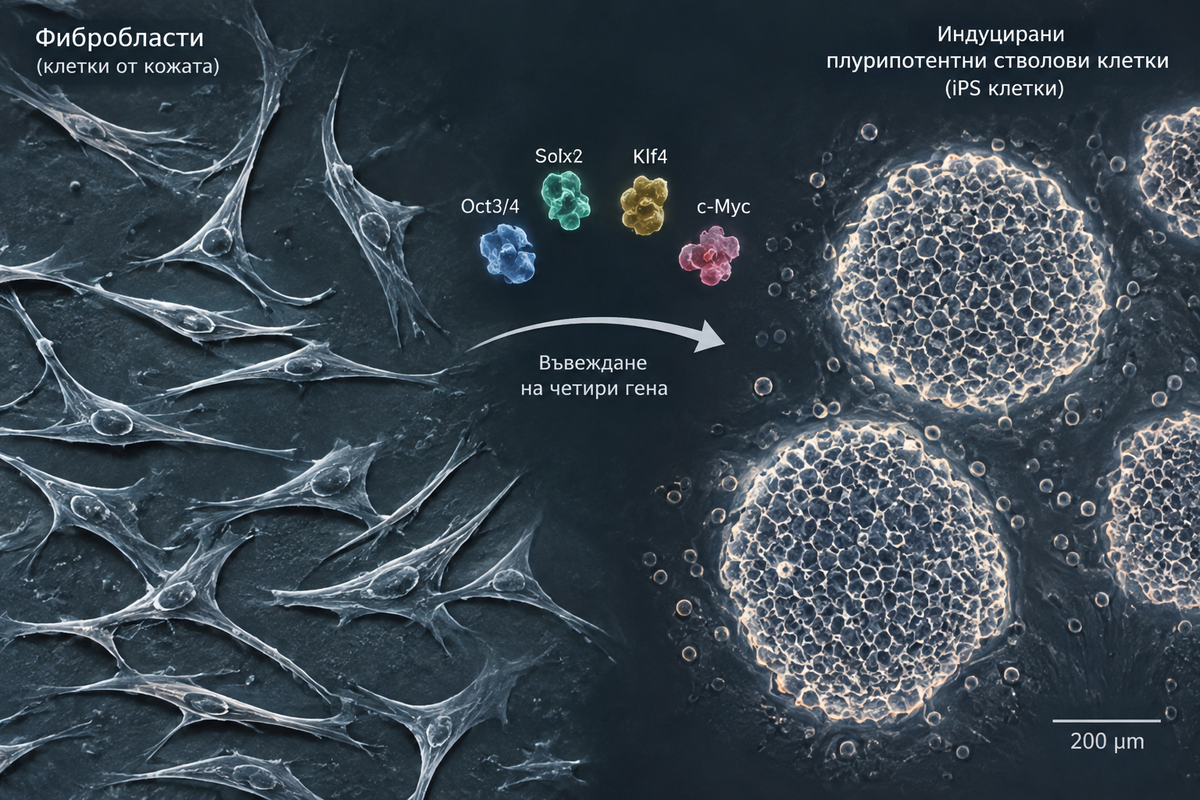
Под микроскоп разликата се вижда веднага. Тя се появява, след като в клетките са въведени 24 кандидатни гена.(кандидатен ген -ген, за който се предполага, че участва в даден процес и затова се изследва)
Всеки от 24-те гена носи инструкция за белтък, свързан със способността на стволовите клетки да се развиват в различни посоки
Екипът на Казутоши Такахаши и Шиня Яманака още не знае кои са нужните, затова през 2006 г. въвежда всичките заедно Списъкът се топи, докато остават четири Oct3/4, Sox2, Klf4 и c-Myc.
Клетъчната специализация дълго изглежда като еднопосочен път. Ранната клетка може да даде начало на много тъкани. С развитието възможностите ѝ се стесняват: нервната клетка поддържа една програма, мускулната друга, клетката на съединителната тъкан трета. ДНК остава почти същата, но различни участъци от нея са достъпни и активни.
Клетъчната програма се поддържа на няколко нива. ДНК заедно с белтъци е организирана в структура, наречена хроматин. Някои области са по-достъпни за прочит, а други са опаковани по-плътно. Химични модификации по ДНК и белтъците около нея участват в регулирането на тази достъпност. Транскрипционните фактори разпознават определени участъци от ДНК и могат да насочват активността на цели групи гени.
Тази мрежа поддържа клетъчната идентичност. Отвореният хроматин позволява прочита на определени гени, а белтъците и химичните белези поддържат състоянието при следващото делене.
Десетилетия по-рано Джон Гърдън вече е показал, че зрелият клетъчен геном не губи непременно информацията за цял организъм. Когато ядро от специализирана клетка на жаба бъде поставено в яйцеклетка без собствено ядро, обкръжението на яйцеклетката може да върне това ядро към развитие. Яманака поставя по-тесен и по-смел лабораторен въпрос: може ли цяла зряла клетка да бъде върната назад с малък, точно определен набор от фактори, без яйцеклетка?
Как четирите фактора промениха клетъчната програма
Четирите гена кодират транскрипционни фактори. Техните белтъци се свързват с регулаторни участъци на ДНК, променят активността на много други гени и заедно задействат мрежата на плурипотентното състояние.
Екипът нарича получените клетки индуцирани плурипотентни стволови клетки, или iPS клетки. „Индуцирани“ означава, че състоянието е предизвикано експериментално. „Плурипотентни“ означава, че клетките могат да дадат начало на типове от трите основни зародишни слоя, от които се развиват тъканите на тялото.
Година по-късно плоските клетки са човешки
Първата публикация е за миши ембрионални и възрастни фибробласти. През 2007 г. екипът повтаря основната намеса с фибробласти от кожата на възрастни хора. В тях въвежда същите четири гена. След няколко седмици сред плоските човешки клетки отново се появяват плътни колонии с ясни граници.
Външният вид е първата следа. Сега учените трябва да установят какви клетки са се получили.
Първо търсят белтъци по клетъчната повърхност, характерни за човешките ембрионални стволови клетки. После сравняват активността на хиляди гени. Проверяват дали ключови гени за плурипотентното състояние отново са активни и как изглеждат химичните белези около техните регулаторни области. Измерват и теломеразната активност — една от характеристиките на клетките, които могат да се делят продължително.
Накрая учените насочват клетките към производни на трите зародишни слоя: ектодерма, мезодерма и ендодерма. След инжектиране в мишки клетките образуват тератоми, съдържащи тъкани и от трите слоя. Така една колония може да даде начало на клетки с белези на различни линии — такива, от които произлизат нервната система и кожата; мускулите, костите и кръвта; червата, черният дроб и други вътрешни тъкани.
Какво всъщност се е върнало назад
Последователността на генома не е пренаписана като нов текст. Променя се начинът, по който клетката използва този текст. Фибробластната програма губи господстващото си положение; отварят се други регулаторни области; активират се мрежи, които могат да се поддържат сами. По време на този преход се променят генната активност, достъпът до хроматина и епигенетични белези, като метилирането на ДНК.
Епигенетичното състояние е устойчивият начин, по който клетката подрежда достъпа до почти непроменената си ДНК. При препрограмирането тази подредба преминава през нестабилни междинни състояния. Малка част от клетките достигат до колония, в която новата програма се поддържа и при следващите деления.
В края на опита от 24-те имена остават четири: Oct3/4, Sox2, Klf4 и c-Myc. Сред плоските клетки се виждат компактни колонии. ДНК библиотеката е почти същата. Променена е програмата, която определя кои страници да останат отворени.
Източници
- Kazutoshi Takahashi и Shinya Yamanaka, Induction of Pluripotent Stem Cells from Mouse Embryonic and Adult Fibroblast Cultures by Defined Factors, Cell, 2006.
- Kazutoshi Takahashi и съавтори, Induction of Pluripotent Stem Cells from Adult Human Fibroblasts by Defined Factors, Cell, 2007.
- Nobel Assembly at Karolinska Institutet, Mature cells can be reprogrammed to become pluripotent — Advanced Information, 2012.
- Shinya Yamanaka, The Winding Road to Pluripotency, Nobel Lecture, 2012.
- Matthias Stadtfeld и Konrad Hochedlinger, Induced Pluripotency: History, Mechanisms, and Applications, Genes & Development, 2010.


